sábado, 30 de mayo de 2015

Variabilidad genética

La variabilidad genética se refiere a la variación en el material genético de una población o especie, e incluye los genomas. Para que la selección natural pueda actuar sobre un carácter, debe haber algo que seleccionar, es decir, varios alelos para el gen que codifica ese carácter. Además, cuanta más variación haya, más evolución hay. Ronald Fisher demostró matemáticamente que cuantos más alelos existan para un gen, más probabilidad hay de que uno de ellos se imponga al resto (se fije). Esto implica que cuanta más variabilidad genética exista en una población, mayor será el ritmo de la evolución. Esto se conoce como "Teorema fundamental de la selección natural de que establece y varía en cambios y transformaciones."

El ritmo de aumento en adaptación de un organismo en cualquier momento es igual a su variación genética en adaptación en ese momento.

Ronald Fisher


Fuentes de variación genética:
Las dos fuentes principales de variación genética son las mutaciones y la combinación de genes que resultan de la reproducción sexual.

-Mutaciones: Una mutación es cualquier cambio en una secuencia de ADN. Las mutaciones pueden deberse a errores en la replicación del ADN, a radiaciones o sustancias químicas del medio ambiente. Las mutaciones no siempre afectan el fenotipo de un organismo, es decir, sus características físicas, de conducta y bioquímicas. Por ejemplo, un codón de ADN alterado de GGA a GGU codificará el mismo aminoácido, glicina. Esa mutación no tiene efecto en el fenotipo. Sin embargo en muchas mutaciones, sí afectan en el fenotipo. Algunas, incluso afectan la eficacia biológica de un organismo o la capacidad para sobrevivir y reproducirse en su medio ambiente. Otras mutaciones pueden no afectar la eficacia biológica.

-Combinación de genes: Las mutaciones no son la única fuente de variación hereditaria. La mayoría de las diferencias hereditarias se debe a la combinación de genes que ocurre durante la reproducción de gametos. Hay que recordar que cada cromosoma de un par homólogo se mueve independiente durante la meiosis. Por ello, los 23 pares de cromosomas que tienen los humanos pueden reproducir 8,4 millones de combinaciones de genes, todas diferentes. También durante la meiosis ocurre otro proceso, el cruzamiento. El cruzamiento aumenta aún más la cantidad de genotipos distintos que pueden aparecer en la descendencia. Cuando los alelos se recombinan durante la reproducción sexual, pueden reproducir fenotipos muy diferentes. Por ello, la reproducción sexual es una fuente importante de variación en muchas poblaciones.


Causas de la variación:
Las razones por las cuales se da variación en la descendencia son:

-Mezcla al azar de genes de los progenitores: En los seres diploides los cromosomas homólogos (contienen genes para los mismos caracteres) se heredan uno de un progenitor y otro del otro, produciendo combinaciones aleatorias de caracteres.

-Combinaciones de cromosomas: Los gametos también son diferentes entre sí, ya que cada uno recibe un ejemplar al azar de cada tipo de cromosoma.


-Recombinación de genes: Se produce durante la profase I de la meiosis, y en ella se da un entrecruzamiento entre una de las dos cromátidas de los cromosomas homólogos, por lo que las cromátidas resultantes son diferentes entre sí y de las originales.

Teoría de la generación espontánea

La teoría de la generación espontánea es una antigua teoría biológica que sostenía que ciertas formas de vida (animal y vegetal) surgen de manera espontánea a partir ya sea de materia orgánica, inorgánica o de una combinación de las mismas.

Creencia profundamente arraigada desde la antigüedad ya que fue descrita por Aristóteles, luego sustentada y admitida por pensadores como Descartes, Bacon o Newton, comenzó a ser objetada en el siglo XVII. Hoy en día la comunidad científica considera que esta teoría está plenamente refutada.

Diversos experimentos se realizaron desde el año 1668 en virtud de encontrar respuestas hasta que Louis Pasteur demostró definitivamente a mediados del siglo XIX que la teoría de la generación espontánea es una falacia, postulando la ley de la biogénesis, que establece que todo ser vivo proviene de otro ser vivo ya existente


El experimento de Redi

Francesco Redi, médico e investigador, realizó un experimento en 1668 mediante tres vasos en los que puso respectivamente un pedazo de pescado, anguila y carne de buey, cerrándolos herméticamente. Preparó luego otros tres vasos con los mismos materiales y los dejó abiertos. Al poco tiempo –dado que algunas moscas fueron atraídas por los alimentos de los vasos abiertos– comenzaron a aparecer larvas. Esto no se verificó dentro de los vasos cerrados ni siquiera después de varios meses. Por tal motivo Redi llegó a la conclusión que los gusanos se originaban gracias a las moscas y no por generación espontánea de la carne en descomposición. Algunos objetaron que en los vasos cerrados había faltado la circulación del aire (el principio activo o principio vital) y eso había impedido la generación espontánea. Redi realizó un segundo experimento: esta vez los vasos del experimento no fueron cerrados herméticamente, sino sólo recubiertos con gasa. El aire, por lo tanto, podía circular. El resultado fue idéntico al del anterior experimento por cuanto la gasa, evidentemente, impedía el acceso de insectos a los vasos y la consiguiente deposición de los huevos.


El experimento de Pasteur

En la primera mitad del siglo XIX, Louis Pasteur realizó una serie de experimentos que probaron definitivamente que también los microbios se originaban a partir de otros microorganismos. Siguiendo la recomendación de Balard, utilizó dos frascos de cuello de cisne (similares a un Balón de destilación con boca larga y encorvada). Estos matraces tienen los cuellos muy alargados que se van haciendo cada vez más finos, terminando en una apertura pequeña, y tienen forma de "S". En cada uno de ellos metió cantidades iguales de caldo de carne (o caldo nutritivo) y los hizo hervir para poder eliminar los posibles microorganismos presentes en el caldo. La forma de "S" era para que el aire pudiera entrar y que los microorganismos se quedasen en la parte más baja del tubo.


Pasado un tiempo observó que ninguno de los caldos presentaba señales de la presencia de microorganismos y cortó el tubo de uno de los matraces. El matraz abierto tardó poco en descomponerse, mientras que el cerrado permaneció en su estado inicial. Pasteur demostró así que los microorganismos tampoco provenían de la generación espontánea. Gracias a Pasteur, la idea de la generación espontánea fue desterrada del pensamiento científico y a partir de entonces se aceptó de forma general el principio que decía que todo ser vivo procede de otro ser vivo. Aún se conservan en el Museo Louis Pasteur de París4 algunos de estos matraces que el científico utilizó para su experimento.


Especiación

En biología se denomina especiación al proceso mediante el cual una población de una determinada especie da lugar a otra u otras especies. El proceso de especiación, a lo largo de 3.800 millones de años, ha dado origen a una enorme diversidad de organismos, millones de especies de todos los reinos, que han poblado y pueblan la Tierra casi desde el momento en que se formaron los primeros mares.

A pesar de que el aislamiento geográfico juega un papel importante en la mayoría de los casos de especiacion no es el único factor.

El término se aplica a un proceso de división de clados (cladogénesis) más que el de evolución de una especie a otra (anagénesis). La especiación también puede ocurrir artificialmente en la cría de animales o plantas o en experimentos de laboratorio.


Principales mecanismos de especiación:

Cladogénesis:

La cladogénesis o bifurcación es el mecanismo de especiación más importante. Se produce por aislamiento reproductivo de diferentes poblaciones de una especie debido a las barreras a la hibridación que pueden ser precigóticas o postcigóticas.

-Las barreras precigóticas son mecanismos de aislamiento que tienen lugar antes o durante la fecundación, a la que limitan, actúan antes del intercambio gamético. Puede ser por aislamiento ecológico, etológico o mecánico.

-Las barreras postcigóticas son todas las que atañen a la viabilidad de los individuos producidos, a través de abortos espontáneos, esterilidad del híbrido, muerte prematura, híbridos débiles y enfermizos, etc.


Hibridación:

Hibridación es el cruce reproductivo entre dos especies distintas que pueden producir individuos viables, que pueden ser o no fértiles. Aunque la hibridación en animales puede ser un proceso natural, lo más frecuente es que esté asociado a alteraciones provocadas por la introducción de nuevas especies por el hombre desde que descubrió la ganadería. Es sumamente difícil que esto dé lugar a nuevas especies en los animales.


Entre las plantas la hibridación es un fenómeno extremadamente común. La introgresión es la penetración de genes de una especie en otra por medio de la hibridación. Los híbridos tienden a derivar, en las sucesivas generaciones, hacia los caracteres de uno de los parentales, pero en el proceso puede quedar fijada la transferencia de algunos genes desde la otra especie. No obstante, al igual que en los animales la formación de nuevas especies por hibridación es sumamente rara en las plantas.


Lamarckismo


Lamarckismo es el término usado para referirse a la teoría de la evolución formulada por Lamarck. En 1809 en su libro Filosofía zoológica propuso que las formas de vida no habían sido creadas ni permanecían inmutables, como se aceptaba en su tiempo, sino que habían evolucionado desde formas de vida más simples. Describió las condiciones que habrían propiciado la evolución de la vida y propuso el mecanismo por el que habría evolucionado. La teoría de Lamarck es la primera teoría de la evolución biológica, adelantándose en cincuenta años a la formulación de Darwin de la selección natural en su libro El origen de las especies.


Lamarck en su teoría propuso que la vida evolucionaba “por tanteos y sucesivamente”, “que a medida que los individuos de una de nuestras especies cambian de situación, de clima, de manera de ser o de hábito, reciben por ello las influencias que cambian poco a poco la consistencia y las proporciones de sus partes, de su forma, sus facultades y hasta su misma organización”. Sería la capacidad de los organismos de adaptarnos al medio ambiente y los sucesivos cambios que se han dado en esos ambientes, lo que habría propiciado la Evolución y la actual diversidad de especies.
Como mecanismo para traducir esos presupuestos en cambios evolutivos, propuso el mecanismo conocido como “herencia de los caracteres adquiridos”, refiriéndose a la, hasta el día de hoy no demostrada, capacidad de los organismos de trasladar a la herencia los caracteres adquiridos en vida. Esta herencia no sería ni directa ni individual, sino que sería tras largo tiempo de estar sometidos a parecidas circunstancias y afectarían al conjunto de los individuos del grupo sometido a esas circunstancias.


La teoría de Lamarck no fue tenida en cuenta en el momento de su formulación, siendo 50 años más tarde, con la publicación de El origen de las especies, cuando los evolucionistas y el propio Darwin la rescataron para intentar cubrir el vacío que la selección natural dejaba al no proponer la fuente de la variabilidad sobre la que actuaría la selección.

A principios del siglo XX, con la formulación de la barreraWeismann, que enuncia la imposibilidad de transferencia de información entre la línea somática y la germinal, el lamarckismo fue desechado considerándolo erróneo. No obstante, durante el siglo XX han existido evolucionistas que han defendido el lamarckismo, existiendo en la actualidad voces desde la biología y el evolucionismo que reivindican su reformulación.

Lamarck, su Filosofía zoológica (actualmente sería teoría zoológica) me parece el libro más importante de la biología que se haya escrito jamás. Lamarck fue el que aplicó el concepto de biología al estudio de los seres vivos dotándole de una base teórica para que tuviera consistencia. [...] Era una persona que tenía una capacidad impresionante de comprensión de la Naturaleza, tenía una visión bellísima de la Naturaleza...


Máximo Sandín, La evolución a 150 años de Darwin, conferencia en la Universidad de Oviedo, 16/11/2009.

La Teoria darwinista o Darwinismo


El darwinismo es un término con el que se describen las ideas de Charles Darwin, especialmente en relación a la evolución biológica por selección natural.

El darwinismo no es sinónimo de evolucionismo, este último es anterior a Charles Darwin: las teorías darwinistas son evolucionistas, pero su aportación clave es el concepto de selección natural considerado determinante para explicar la causa de la evolución y que en su posterior desarrollo, con numerosas aportaciones y correcciones, permitirá la formulación de la teoría de la evolución actual. Por tanto es igualmente equivocado usar el término «darwinismo» para referir la actual teoría de la evolución, ya que esta no se reduce sólo a las ideas postuladas por Charles Darwin.


La selección natural:

La selección natural es un fenómeno de la evolución que se define como la reproducción diferencial de los genotipos de una población biológica. La formulación clásica de la selección natural establece que las condiciones de un medio ambiente favorecen o dificultan, es decir, seleccionan la reproducción de los organismos vivos según sean sus peculiaridades. La selección natural fue propuesta por Darwin como medio para explicar la evolución biológica. Esta explicación parte de tres premisas; la primera de ellas el rasgo sujeto a selección debe ser heredable. La segunda sostiene que debe existir variabilidad del rasgo entre los individuos de una población. La tercera premisa aduce que la variabilidad del rasgo debe dar lugar a diferencias en la supervivencia o éxito reproductor, haciendo que algunas características de nueva aparición se puedan extender en la población. La acumulación de estos cambios a lo largo de las generaciones produciría todos los fenómenos evolutivos.

En su forma no inicial, la teoría de la evolución por selección natural constituye el gran aporte de Charles Darwin (e, independientemente, por Alfred Russel Wallace), fue posteriormente reformulada en la actual teoría de la evolución, la síntesis moderna. En biología evolutiva se la suele considerar la principal causa del origen de las especies y de su adaptación al medio.
La selección natural puede ser expresada como la siguiente ley general, tomada de la conclusión de El origen de las especies:


Existen organismos que se reproducen y la progenie hereda características de sus progenitores, existen variaciones de características si el medio ambiente no admite a todos los miembros de una población en crecimiento. Entonces aquellos miembros de la población con características menos adaptadas (según lo determine su medio ambiente) morirán con mayor probabilidad. Entonces aquellos miembros con características mejor adaptadas sobrevivirán más probablemente.

Darwin, El origen de las especies

miércoles, 25 de febrero de 2015

Primera Ley de Mendel: Ley de la uniformidad

A esta ley se la llama también Ley de la uniformidad de los híbridos de la primera generación (F1), y establece que si se cruzan dos razas puras (homocigotos) para un determinado carácter, los descendientes (híbridos) de la primera generación serán todos iguales entre sí (igual fenotipo e igual genotipo) e iguales (en fenotipo) a uno de los progenitores.

No es una ley de transmisión de caracteres, como ya dijimos, sino de manifestación de dominancia frente a la no manifestación de los caracteres recesivos.

Mendel llegó a esta conclusión trabajando con una variedad pura de plantas de arvejas que producían las semillas amarillas y con una variedad que producía las semillas verdes. Al hacer un cruzamiento entre estas plantas, obtenía siempre plantas con semillas amarillas. (Ver Figura 1)


¿Qué significaba esto? Que el polen de la planta progenitora aporta a la descendencia un alelo para el color de la semilla, y el óvulo de la otra planta progenitora aporta el otro alelo para el color de la semilla; de los dos alelos, solamente se manifiesta aquél que es dominante (A), mientras que el recesivo (a) permanece oculto.

Esta Ley de la uniformidad también se cumple cuando un determinado gen dé lugar a una herencia intermedia y no dominante, como es el caso del color de las flores del "dondiego de noche" (Mirabilis jalapa). Al cruzar las plantas de la variedad de flor blanca con plantas de la variedad de flor roja, se obtienen plantas de flores rosas.

La interpretación es la misma que en el caso anterior, solamente varía la manera de expresarse los distintos alelos (Ver Figura 2).


Bibliografia:


Interacciones alélicas

Tal y como Mendel descubrió en sus experimentos, entre los alelos de un mismo gen se producen interacciones. Él definió las relaciones de dominancia y de recesividad, pero existen otras.

Cromosomas en separación, cada uno lleva los alelos correspondientes.

Por ejemplo, los alelos no son siempre dominantes o recesivos, existen ocasiones en que se produce codominancia entre ellos, es decir, que ambos alelos aportan información para la manifestación del rasgo de que se trate. Algo así ocurre con los alelos que controlan el grupo sanguíneo en los seres humanos.

Existen tres alelos para el grupo sanguíneo, A, B, O. Cada alelo codifica para una proteína sanguínea excepto el O, que no codifica para ninguna. Una persona con grupo O tendrá un genotipo OO y en su sangre no se detectarán estas proteínas. Por tanto, al donar sangre, al no existir la proteína el cuerpo receptor no reacciona ante la transfusión. Por esto se dice que el grupo O es el donante universal.

En el caso de que una persona sea del grupo A o B, querrá decir que su sangre presenta una u otra proteína. Pero cuando una persona del grupo A tiene un hijo con otra del grupo B, puede ocurrir que ese hijo sea del grupo AB, es decir, que exprese de forma simultanea ambas proteínas, sin que ninguna domine sobre la otra.

Otra posibilidad que también descubrió Mendel en cuanto a las interacciones de los alelos es la llamada herencia intermedia. Esta interacción la descubrió experimentando con la planta llamada "dondiego de noche", que presenta flores de coloraciones diversas.


En los seres humanos existe algo similar en la herencia de una enfermedad, la anemia falciforme, que se caracteriza por una forma anómala de los glóbulos rojos que dificulta el transporte de oxígeno. Padres con anemia falciforme que tienen hijos con personas sanas pueden tener hijos cuyos glóbulos rojos presenten una forma intermedia entre ambos.


Bibliografia:

Tercera Ley de mendel: Ley de la asociación independiente

Esta ley se la conoce también como la Ley de la herencia independiente de caracteres.


Mendel concluyó que diferentes rasgos son heredados independientemente unos de otros, no existe relación entre ellos, por tanto el patrón de herencia de un rasgo no afectará al patrón de herencia de otro. Cada uno de ellos se transmite siguiendo las leyes anteriores con independencia de la presencia del otro carácter.

Sólo se cumple en aquellos genes que no están ligados (en diferentes cromosomas) o que están en regiones muy separadas del mismo cromosoma.

Para llegar a esta ley Mendel cruzó plantas de arvejas de semilla amarilla y lisa con plantas de semilla verde y rugosa ( Homocigóticas ambas para los dos caracteres). (Figura 7).


Las semillas obtenidas en este cruzamiento eran todas amarillas y lisas, cumpliéndose así la Ley de la uniformidad para cada uno de los caracteres considerados, y revelándonos también que los alelos dominantes para esos caracteres son los que determinan el color amarillo y la forma lisa.

Las plantas obtenidas y que constituyen la F1 son dihíbridas (AaBb).

Estas plantas de la F1 se cruzan entre sí, teniendo en cuenta los gametos que formarán cada una de las plantas y que pueden verse en la figura 8. En el cuadro de la figura 9 se ven las semillas que aparecen y en las proporciones que se indican.


Se puede apreciar que los alelos de los distintos genes se transmiten con independencia unos de otros, ya que en la segunda generación filial F2 aparecen arvejas amarillas y rugosas y otras que son verdes y lisas, combinaciones que no se habían dado ni en la generación parental (P), ni en la filial primera (F1).

Asimismo, los resultados obtenidos para cada uno de los caracteres considerados por separado, responden a la primera ley (de la segregación). ( Figura 9).


Los resultados de los experimentos de la segunda ley refuerzan el concepto de que los genes son independientes entre sí, que no se mezclan ni desaparecen generación tras generación.

Para esta interpretación fue providencial la elección de los caracteres, pues estos resultados no se cumplen siempre, sino solamente en el caso de que los dos caracteres a estudiar estén regulados por genes que se encuentran en distintos cromosomas. No se cumple cuando los dos genes considerados se encuentran en un mismo cromosoma, es el caso de los genes ligados.

En la etapa de metafase I de la meiosis I, los cromosomas están alineados en la región ecuatorial. El orden en el plano ecuatorial es al azar y determina la dirección que tomará cada uno de los cromosomas homólogos en las células hijas, fenómeno conocido como permutación cromosómica.

Sin embargo, el orden de migración entre cromosomas no homólogos a las células hijas es independiente entre sí y dependerá del orden azaroso que tengan los cromosomas en el plano ecuatorial.

De esta forma se deduce que la segunda ley de Mendel o de asociación independiente, ocurre en la metafase I, ya que pueden existir varias combinaciones posibles, por ejemplo, entre dos pares de cromosomas homólogos, llegando a formar cuatro tipos de gametos distintos si se alinean de una forma y cuatro muy distintos si se alinean de otra.


A modo de acotación importante, debemos destacar que en la meiosis la segunda ley de Mendel (de la asociación independiente) ocurre en la Metafase I, o sean antes que la primera (ley de la segregación), que ocurre en la Anafase I.


Bibliografia:


Segunda Ley de Mendel: ley de la segregación


Esta ley establece que para que ocurra la reproducción sexual, previo a la formación de los gametos cada alelo de un par se separa del otro miembro para determinar la constitución genética del gameto hijo.

En su experimento, Mendel cruzó diferentes variedades de semillas de individuos heterocigotos (diploides con dos variantes alélicas del mismo gen: Aa)  (Figura 1).


Del cruce obtuvo semillas amarillas y verdes en la proporción que se indica en la figura 3. Así, pues, aunque el alelo que determina la coloración verde de las semillas parecía haber desaparecido en la primera generación filial, vuelve a manifestarse en esta segunda generación. (Figura 3).


Según la interpretación actual, los dos alelos distintos para el color de la semilla presentes en los individuos de la primera generación filial no se han mezclado ni han desaparecido, simplemente ocurría que se manifestaba sólo uno de los dos.

Esos dos alelos, que codifican para la característica color, son segregados durante la producción de gametos mediante una división celular meiótica. Esto significa que cada gameto va a contener un solo alelo para cada gen. Lo cual permite que los alelos materno y paterno se combinen en el descendiente, asegurando la variación.

Para cada característica, un organismo hereda dos alelos, uno de cada pariente. Esto significa que en las células somáticas, un alelo proviene de la madre y otro del padre. Éstos pueden ser homocigotos o heterocigotos.


Es importante aclarar que que los alelos se separan antes de que se formen los gametos. Precisamente es en la etapa de anafase I de la meiosis I cuando ocurre la separación de los cromosomas homólogos, momento en el que ocurre realmente la haploidia y se cumple con lo establecido por Mendel.

domingo, 15 de febrero de 2015

GENETICA

Mitosi:Es un mètode divisió cel.lular en el que es fa una copia dels gens (o dels cromosomes) abans de realitzarse. Per la cual cosa permet formar clons amb la mateixa configuración genètica en el cas de essers unicel.lulars o créixer als essers pluricel.lulars.
Totes les nostres cèl·lules s’han format per successives divisions del cigot (cigot: obul fecundat per l’espermatozoide.


Cicle cel.lular: Si per terme mitg una cel.lula tarda en dividir-se 24 hores durant 23 el nucli està en interfase el ADN està descondensat en forma de cromatina i els gens s’estàn llegint per a fabricar protines i creixer no s’observen els cromosomas.
Durant 1 hora la cel.lula es divideix i es produeixen molts cambis observables. (La descripción que em fet es molt llarga però sold dura 1 hora).


Interfase: Hi ha 3 subfases.

 
-G1: En la que la ce.lula creix encara no s’han fet les copies d’ADN.

-Subfase S: L’ADN es copia i, a partir d’ara els cromosomas tindran dues cromatides.

-G2: Una volta copiats els cromosomas la ce.lula es prepara per a la divisió copiant, duplicant els centriols i formant i preparant les proteines dels microtubuls que ajudaran a repartir els cromosomes durant la divisió.


Profase: La cromatina es condensa i els cromosomes comencen a ser visibles. Els centriols es van separnt i a partir dells comencen a a crixer els microtubuls del fus mitotic que permeten el moviment i el repartiment dels cromosomes.


Prometafase: Comença a desapareixer la membrana nuclear, els cromosomes ja estan molt condensats i es fan molt visibles les dues cromatides unides pel centrome. Els centriols es dirigiesen cap a pols oposats de la cel.lula i el fus ja està prácticamente format.


Metafase: Ha desaparegut totalment la membrana nuclear, els cromosomes s’insersereixen als microtubuls del fus mitotic i es disposen al centre de la cel.lula.


Anafase: Les dues cromatides identiques de cada cromosoma se separenm  els microtubuls del fus es contraues s’acurten i arrosseguen les cromatides cap als dos pols de la cel.lula, on es formaran les dues cel.lules filles.


Telofase: Els cromosomes han arrivat a situar-se  en els dos pols de la cel.lula i comencen a descondensarse per a formar una altra vegada la cromatina. Apareix la membrana nuclear i desapareix el fus mitotic.
S’inicia la citocinesi.


Mellosi. Consisteix en dues divisions cel.lulars consecutives semblants a una mitosi però sense que es produixca duplicació de l’ADN entre una i l’altra, com a resultat es formen 4 cel.lules amb la meitat de cromosomes que la cel.lula mare. Només te lloc durant la formació dels gametes.
Les cel.lules resultants de la mellosi no son iguals entre si perque han patit encreuament.


BIBLIOGRAFIA:


-Informació: Ens ho van dictar a classe.

-Imatges: Google imatges.

sábado, 22 de noviembre de 2014

Dorsal oceànica


Formació d'una dorsal.

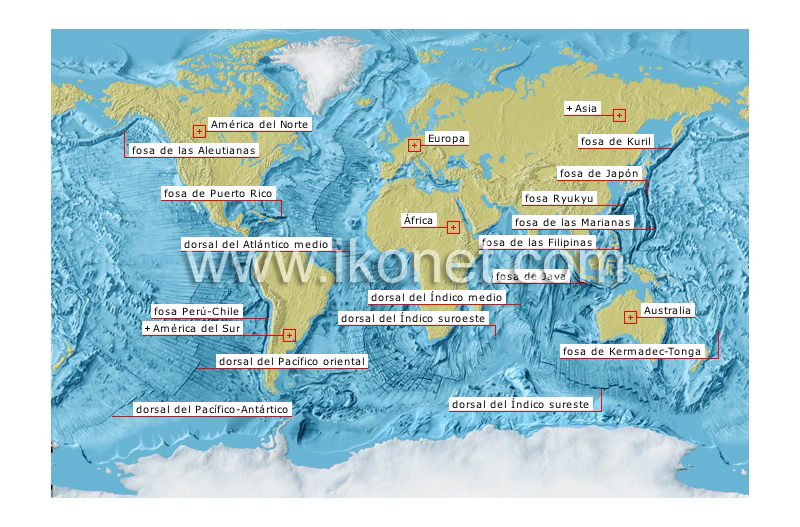
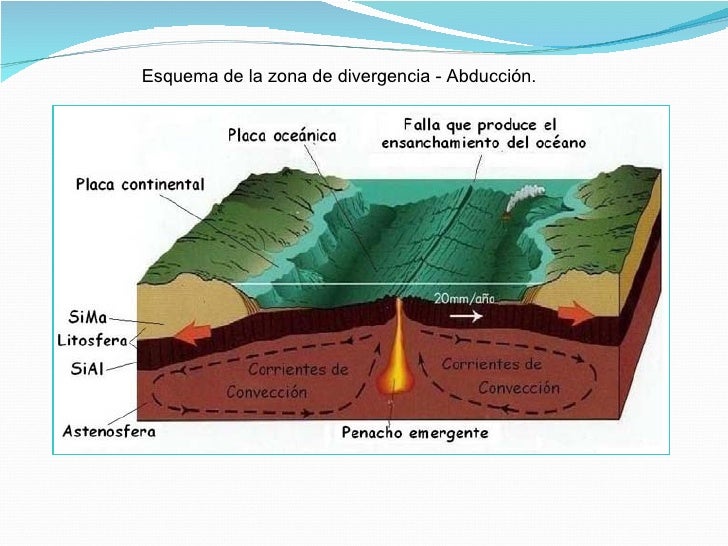
Les dorsals oceàniques són grans serralades submergides que arriben a superar els 3.000 m d'altura, normalment presenten un solc central anomenat rift per on surt magma procedent de l'astenosfera i que es diposita als dos costat creant més sòl oceànic. Els cims més elevats sobresurten de les aigües i formen illes. Aquestes formacions es troben als límits entre dues plaques tectòniques. Aquest tipus de serralades oceàniques actuen com a centres d'expansió oceànica i són les responsables del d'extensió del llit marí. L'elevació del fons marí ve donada pels corrents de convecció que fan emergir magma surt del mantell per fissures longitudinals de l'escorça oceànica.

Les dorsals oceàniques del món estan connectades i formen un sol sistema de crestes que recorren tots els oceans de la Terra, fent de les dorsals oceàniques la serralada més llarga de la Terra. Les dorsals continuades formen de 65.000 km de llargada i la totalitat de les dorsals formen un sistema de 80.000km.

Les dorsals oceàniques són formacions geològicament actives amb aportacions constants de nou magma sobre el llit oceànic i sobre la mateixa línia de crestes. Aquest magma refredat forma una crosta de basalt i gabre.

Les roques que componen aquesta escorça són més joves sobre l'eix de la cresta i la seva edat augmenta conforme ens hi allunyem. El nou magma de basalt emergeix a prop de l'eix degut a la a fusió per descompressió de les capes inferiors del mantell terrestre .

L'escorça oceànica està composta de roques molt més joves que la Terra. L'escorça de les conques oceàniques té menys de 200 milions d'anys. L'escorça es troba en un constat procés de renovació gràcies a les dorsals oceàniques. A mesura que ens allunyem de la dorsal, l'oceà guanya en profunditat, i les majors profunditat s'assoleixen en les fosses marines. Conforme l'escorça oceànica es va movent allunyant-se de la dorsal, la peridotita situada per sota es refreda i es fa més rigida, aquesta escorça i la peridotita rígida conformen la litosfera oceànica.

L'expansió lenta de les dorsals com la dorsal mesoatlàntica produeix, generalment, valls de rift llargs i amples, a vegades de 10 a 20 km d'amplada de terreny accidentat fins als 1000 m en la cresta de la dorsal, per contra les dorsals d'expansió ràpida com la dorsal del Pacífic Oriental presenten incisions estreta i punxegudes envoltades generalment per una topografia plana que descendeix de la dorsal sobre milers de quilòmetres.

L'escorça oceànica es crea en les dorsals oceàniques, mentra que la litosfera se subdueix en l'astenosfera en les fosses.

Es pensa que són dos els processos involucrats en l'expansió de les dorsals oceàniques, la força d'empenta de la dorsal i la tracció litosfèrica (força d'estirament de la placa), hi ha certa incertesa sobre quina de les dues és dominant. La força d'empenta actua quan la massa creixen de la dorsal empeny la resta de la placa tectònica allunyant-la de la dorsal, sovint cap a la zona de subducció. A la zona de subducció, la tracció litosfèrica entra en joc. És a dir, el pes de la placa tectònica en subducció per sota de la placa arrossega la resta de la placa amb el seu moviment.

L'altre procés proposat per contribuir a la formació de la nova escorça oceànica és la convecció del mantell. Això no obstant, hi ha hagut diferents estudis que han mostrat que l'astenosfera superior del mantell és massa plàstica (flexible) per a generar prou fricció per a estirar de la placa. A més, a diferència de la imatge, el mantell aflorat que causa el magma sota de les dorsals oceàniques sembla només afectar la seva part superior 400 km, com es dedueix de la tomografia sísmica i pels estudis de la discontinuïtat sísmica al voltant del 400 km. La relativa poca profunditat des de la que aflora el mantell per sota de les dorsals és més consistent al procés de tracció litosfèrica. Però, d'altra banda, algunes de les plaques tectòniques més grans com la placa nord-americana estan en moviment i encara no presenten subducció.

La velocitat a la que les dorsals oceàniques creen nou material es coneix com la velocitat d'expansió, que generalment es mesura en mm/any. Les velocitats d'expansió se solen dividir en tres tipus:

-Expansió ràpida, més de 100mm/any

-Expansió mitjana, entre 100 i 55 mm/any

-Expansió lenta entre 55 i 20 mm/any

La velocitat d'expansió de l'oceà Atlàntic és de ~ 25 mm/any, mentre que el pacífic està sobre els 80–120 mm/any. Les dorsals que s'expandeixen a velocitats menors a 20 mm/any s'anomenen ultra lentes (per exemple la dorsal de Gakkel a l'oceà Àrtic).

Els sistemes de dorsals oceàniques formen nova escorça oceànica. Com el basalt cristal·litzat extruït en els eixos de la dorsal es refreda per sota del punt de Curie dels òxids de ferro-titani, aquests òxids s'alineen al camp magnètic de la Terra en aquell moment. El registre de l'orientació del camp de l'escorça oceànica guarda un registre de les direccions del camp magnètic terrestre. Comp el camp ha canviat la direcció a intèrvals irregulars durant la història, el patró dels canvis en l'escorça oceànica es pot usar com a indicador de la seva edat. De la mateixa manera, el patró dels canvis de camp magnètic juntament amb les mesures de l'edat de l'escorça s'usa per establir la història del camp magnètic terrestre.


Bibliografia.

Informació extreta de: Wikipedia.

Imatgens extretes de: Google imatgens.

Geodinámica interna.

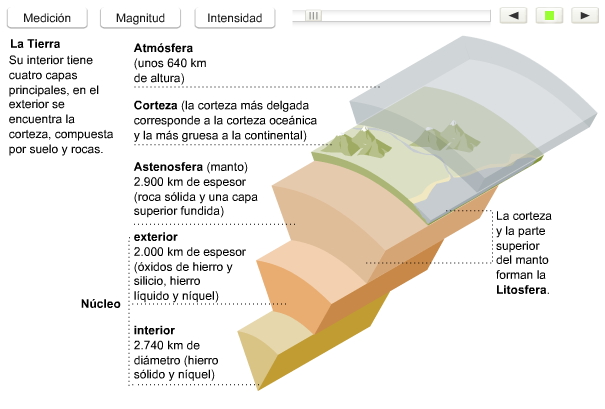
La Geodinámica Interna estudia les transformacions de l’estructura interna de la Terra en relació amb les forces que actuen al seu interior, utilitzant técniques de prospecció (técniques geofísiques). Les técniques geofísiques mes frecuents son:

-Análisi de ones sísmiques (Sismología).
-Mesures de GPS de alta presició.
-Estudis geológics estructurals de camp.
-Datació de mostres rocoses.
-Cuantificació de les tases d’erosió en base al contingut isotópic en mostres de roca.
-Simulació computacional de processos.

El avanç mes important en el camp de la Geodinámica Interna ha sigut la aceptació en els anys 1960-1980 del concepte de Tectónica de plaques (Geotectónica).

Agents geodinámica interna.

-Actuen desde l’interior de la Terra.
-Poden produir desplaçaments en contra de la gravetat.
-Solen augmentar el relleu de la superficie terrestre.
-S’originen en el mant superior o en la astenosfera.
-Agents endógens.

1.Agents Magmátics.

Les roques originades per refredament i solidificació del magma es denominen roques ígnees. Si la solidificació es verifica davall de la superficie de l’escorça es parla de plutonisme i les roques resultants formen roques intrusives.

2.    Agents sísmics.

Temblors i terratremols.

Els agents sísmics constitueixen un dels agents que produeixen cambis mes repentins i violents en el relleu terrestre.

Terratremol es un seisme que te poder destructor, va acompanyat de fortes sacudides i de soroll subterrani paregut a trons profunds que es deuen als moviments vibratoris de frecuencia audible de mes de vibracions per segón.

3.    Agents tectónics.

Plegaments.

Son qüalsevol ona pronunciada en les capes d’una roca que resulten de les deformacions plástiques, degut a les presions en el interior de la Terra es caracteritzen com anticlinal i sinclinal.

Falles geológiques.

Son fractures de les roques, els seus costats es desplacen, es produeixen cuant les forces aplicades sobre les roques superen la seua resistencia y es trenquen, les principals falles que es poden trobar son la de tipo Normal, la inversa i la transcorrent u horitzontal.

Epirogénesi o Epirogenia.

Es un procés apacible i conservador de l’estructura; es una evolució.

Els moviments epirogénics de afonament donen lloc a la formació de grans depresions, com la del mar negre i del mediterrani i la conca de Maracaibo.

Orogénesi y orogenia.

Es diu així el conjunt dels processos mijant els cuals es formen les grans cadenes montanyoses. Els moviments orogénics solen iniciarse en els geosinclinals.


Bibliografia.

-Informació extreta de: Wikipedia.

-Imatgens extretes de: Google imatgens.

viernes, 7 de noviembre de 2014

Eroció

L'erosió en geomorfologia, és el procés de degradació i de transformació del relleu, i de les roques, causat per tot agent extern (diferent de la tectònica). Normalment hi ha erosió pel transport de sediments a través del vent, aigua o gel; a favor del pendent de sòls i altres materials sota la força de la gravetat; o per organismes vius com són els animals excavadors, que s'anomena bioerosió.

Malgrat que l'erosió és un procés natural s'ha incrementat moltíssim per l'ús humà de la terra. Aproximadament un 40% de la superfície agrícola mundial està seriosament degradada per l'erosió.

L'erosionabilitat mesura la capacitat d'un sòl de ser erosionat i depèn de factors com la duresa, estar cobert per vegetació o el seu pendent.

L'erosió no és el mateix que la meteorització, que és la disgregació de la roca sense desplaçament del material (si bé la meteorització facilita l'erosió), ni és el mateix que el transport dels materials erosionats, que és el següent pas del cicle geològic, i que normalment realitza el mateix agent que ha produït l'erosió.


Un problema particularment seriós és l'erosió costanera propiciada pel fet de fer construccions molt a la vora de la mar, les quals pertorben el flux de sediments cap a elles.


Factors de l'erosió:
  • El clima;
  • El pendent;
  • Factors físics (duresa) i químics (solubilitat per exemple) de la roca;
  • L'absència o no de coberta vegetal i la naturalesa dels vegetals;
  • La història tectònica (fracturació per exemple);
  • L'acció humana (pràctiques agrícoles, desforestació, urbanització).
Erosió mecànica:
La disgregació mecànica es fa sota l'acció d'una força física que arrossega els trossos de roca més o menys voluminosos:

Esclat pel gel o la calor ;
Fregament: glacera, acció de l'aigua (cavitació) o del vent. L'erosió mecànica és particularment activa en els medis fred o àrids.
Erosió a càrrec de l'aigua.
És de caràcter mecànic i químic i té com a principals alteracions: la hidroclàstia (trencament per l'aigua per l'alternança humectació/dessecació), l'impacte de les gotes que cauen al sòl, la reptació i la solifluxió. El pendent reforça l'erosió hídrica. En el litoral cal tenir en compte les onades i els corrents marins.

Les torrentades són el tipus d'erosió més freqüent al món. Pot ésser concentrada (torrents, uadis) o difusa (pel·lícula d'aigua i l'erosió litoral)

Erosió pel vent:

Aquest tipus d'erosió és més eficaç quan no hi ha obstacles i el vent és fort, regular i carregat de partícules.

L'erosió eòlica empobreix el sòls però pot enriquir els sòls allà on és transportat com passa en la pols extreta del Sàhara o el loess.

Erosió lligada a la diferència de temperatura.
En regions amb forta amplitud tèrmica (clima continental, polar, deserts, alta muntanya, etc.), els xocs tèrmics repetits per la successió de cicles "dia/nit" fan esclatar determinades roques, en el fenomen conegut com a termoclàstia. En cas de gel/desgel ocorre la crioclàstia . El cicle gel/desgel és de temporada (a Sibèria per exemple) o quotidià a l'alta muntanya.


Erosió química:
La descomposició química de les muntanyes dóna lloc a relleus desgastats com el massís central francès o els Apalatxes dels Estats Units.

La dissolució és el principal procés, en particular de roques calcàries per la pluja que forma el karst.
Al contrari que les roques silícies, les calcàries són particularment vulnerables a la disssolució. També altres roques i minerals són solubles:

menys de 0,05 grams per litre de quars
1 gram per litre per als carbonats
2,4 grams per litre de guix
2,5 grams pels sulfats
300 grams per litre de sal gemma

L'alteració química comprèn: hidratació, oxidació, oxido-reducció, hidròlisi.
En la zona intertropical, l'alteració de les roques feldspatíques par lixiviació permet la formació de laterita, amb hidròxid d'alumini i ferro formant capes superficials molt dures.

La hidròlisi és el procés de ruptura dels enllaços químics dels minerals, dóna origen a òxids com la limonita, o argiles i amb el temps acaba formant un sòl.


Erosió dels sòls agrícoles.
Risc d'erosió als sòls (Europa mediterrània)
L'erosió dels sòls agrícoles és provocada pel sobrepasturatge, les llaurades a favor del pendent, la pèrdua de matèria orgànica dels sòls. Els conreus en pendents excessius, la monocultura, el deixar la terra nua a l'hivern, els herbicides que deixen el sòl sense protecció, la supressió de tanques vegetals, el pas repetit de maquinària pesant etc.


Erosió del sòl i canvi climàtic.
S'espera que amb la pujada global de temperatures l'erosió s'incrementi, ja que el cicle hidrològic sigui més vigorós amb episodis de pluges extremes. S'espera que a gran part del món la pluviometria anual augmenti (no pas en zones subtropicals o de clima mediterrani). El poder erosiu de l'aigua augmentarà i s'haurien de prendre mesures urgents per a conservar el sòl. Per exemple en el cas de la tundra la fusió de gran part del permagel convertirà aquest tipus de sòls en erosionables i actualment no ho són pas. Segons els estudis efectuats per Pruski i Nearing es pot esperar un 1,7% de canvi en erosió del sòl per cada 1% d'augment en la precipitació total sota el canvi climàtic.

Bibliografia:

-Informació: Viquipèdia.
-Imatgens: Google imatgens

domingo, 2 de noviembre de 2014

Sedimentació


La sedimentació és el procés pel qual el material sòlid, transportat per un corrent d'aigua, es diposita en el fons del riu, embassament, canal artificial, o dispositiu construït especialment per a tal fi. Tota corrent d'aigua, caracteritzada pel seu cabal, tirant d'aigua, velocitat i forma de la secció té una capacitat de transportar material sòlid en suspensió. El canvi d'alguna d'aquestes característiques del corrent pot fer que el material transportat se sedimenti; o el material existent en el fons o marges de la llera sigui erosionat.


La sedimentació de sòlids en líquids està governada per la llei de Stokes, que indica que les partícules sedimenten més fàcilment quan major és el seu diàmetre, el seu pes específic comparat amb el del líquid, i quan menor és la viscositat del líquid. Per això, quan es vol afavorir la sedimentació es tracta d'augmentar el diàmetre de les partícules, fent que s'agreguin unes a unes altres, procés denominat coagulació i floculació.

Els dispositius construïts perquè es produeixi la sedimentació en ells són:

Desarenador: dissenyat perquè se sedimentin i retinguin només partícules majors d'un cert diàmetre nominal i en general d'alt pes específic (sorra);

Sedimentadors o decantadors, normalment utilitzats en plantes de tractament d'aigua potable, i plantes de tractament d'aigües servides;

Preses filtrants: destinades a retenir els materials sòlids en les parts altes de les conques hidrogràfiques.

El procés de sedimentació pot ser benèfic, quan es pensa en el tractament de l'aigua, o perjudicial, quan es pensa en la reducció del volum útil dels embassaments, o en la reducció de la capacitat d'un canal de reg o drenatge.

La sedimentació és un procés que forma part de la potabilització de l'aigua i de la depuració d'aigües residuals.


Bibliografia:

-Informació extreta de la Viquipèdia.
-Imatge extreta de google imatges.
-Video extret de el canal de youtube : https://www.youtube.com/user/MrTezca

sábado, 7 de junio de 2014

Aparell reproductor femení

El aparell reproductor femení  consta de dues parts principals: l'úter, que acull el desenvolupament del fetus, produeix secrecions vaginals i uterines, i passa esperma del mascle a través de les trompes de Fal·lopi, i els ovaris, que produeixen els òvuls de la femella. Aquestes parts són internes, la vagina es comunica amb els òrgans externs: la vulva, que inclou els llavis majors, llavis menors, el clítoris i la uretra. La vagina s'insereix en l'úter a través del coll uterí, mentre que l'úter s'uneix als ovaris a través de les trompes de Fal·lopi. En certs intervals, els ovaris alliberen un òvul, que passa a través de la trompa de Fal·lopi cap a l'úter.

Si, en aquest trànsit, es troba amb l'esperma, un espermatozoide i es fusiona amb l'òvul, i es produeix la fertilització. La fertilització ocorre generalment en una de les trompes, però pot ocórrer en l'úter mateix. El zigot s'implanta en la paret de l'úter, on comença el procés de l'embriogènesi i la morfogènesi. Quan està prou desenvolupat per sobreviure fora de l'úter, el coll uterí es dilata i les contraccions de l'úter propulsen el fetus a través del canal del part, que és la vagina.

Els òvuls (que són més grans que els espermatozoides) i en general són creats aproximadament cada mes, en un procés d'oogènesi: madura un òvul per a ser enviat per la trompa de Falopi adjunta al seu ovari en previsió de la fertilització. Si no és fecundat, l'òvul es expulsat del sistema a través de la menstruació.

Els òrgans interns d'una femella reproductiva són la vagina, l'úter, les trompes de Falopi i els ovaris.


Bibliografia:

Font del text: Viquipedia.
Imatgens: Viquipedia.